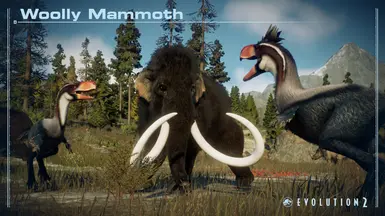
PizzaOtter 和 JohnnyVs 猛犸象(新物种)
此模组添加了独一无二的猛犸象。终于为Joseba的剑齿虎找到了伙伴,也实现了预言所述。我无比自豪终于发布了这个作品!如果没有JohnnyV和Chocolate的帮助,我绝不可能完成!感谢你们!!!
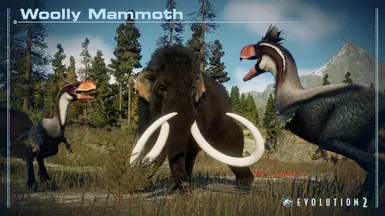 查看大图
免责声明:挖掘点目前失效,将很快修复。
像往常一样,我首先要说,新的物种模组容易出现漏洞和问题。该模组不需要任何 DLC,耶。这只猛犸象是真猛犸象(Mammuthus Primigenius),是晚更新世的巨兽。特别感谢 Chocolate!以及 JohnnyV。接下来是完整的维基百科文章。
真猛犸象(Mammuthus primigenius)是一种已灭绝的猛犸象物种,生存于中更新世直至全新世灭绝。它是猛犸象演化谱系中的最后一批之一,始于早上新世的非洲南方猛犸象(Mammuthus subplanifrons)。真猛犸象大约在80万年前于西伯利亚开始与草原猛犸象分化。其现存最近的亲属是亚洲象。哥伦比亚猛犸象(Mammuthus columbi)在北美与真猛犸象共存,DNA研究显示两者曾相互杂交。在亚洲,猛犸象遗骸在欧洲人了解之前早已为人所知,其起源长期存在争议,常被解释为传说生物的遗骸。1796年,乔治·居维叶确认猛犸象为一种已灭绝的大象物种。
由于在西伯利亚和北美发现了冰冻尸体、骨骼、牙齿、胃内容物、粪便以及史前洞穴壁画中的生动画像,真猛犸象的外观和行为是研究最为深入的史前动物之一。它的大小与现代非洲象大致相同。雄性肩高介于2.67至3.49米(8英尺9英寸至11英尺5英寸),体重介于3.9至8.2公吨(3.8至8.1长吨;4.3至9.0短吨)。雌性肩高2.3–2.6米(7英尺7英寸–8英尺6英寸),体重介于2.8–4公吨(2.8–3.9长吨;3.1–4.4短吨)。新生幼崽体重大约90公斤(200磅)。真猛犸象极适应冰期(包括末次冰期)期间的寒冷环境。它们身披毛发,外层是长的粗毛,内层是较短的绒毛。毛被颜色从深到浅不等。耳朵和尾巴短小以减少冻伤和热量散失。它们拥有长而弯曲的獠牙和四颗臼齿,这些臼齿在个体一生中会更换六次。其行为与现代大象相似,使用獠牙和象鼻进行操控物体、打斗和觅食。真猛犸象的食谱主要是草类和莎草科植物。个体可能活到60岁。其栖息地是横跨欧亚大陆北部和北美的猛犸象草原。
真猛犸象与早期人类共存,人类猎杀它们作为食物,并利用其骨骼和獠牙制作艺术品、工具和住所。真猛犸象的数量在晚更新世末期减少,西伯利亚大陆上最后的种群持续到大约一万年前,尽管孤立的种群在圣保罗岛上存活到5600年前,在弗兰格尔岛上存活到4000年前。在其灭绝后,人类继续使用其象牙作为原材料,这一传统延续至今。2015年完成的猛犸象基因组计划引发了关于通过几种不同方法复活真猛犸象的讨论。然而,目前这些方法均不可行。
分类学
亚当斯猛犸象尸体约1800年解读副本,带有约翰·弗里德里希·布卢门巴赫手写笔迹 真猛犸象的遗骸长期以来为西伯利亚原住民和美洲原住民所知,他们对此有多种解读。在现代科学之前,遗骸后来到达亚洲和欧洲其他地区,也以各种方式被解读。[1][2] 科学家研究的第一批真猛犸象遗骸由英国医生汉斯·斯隆于1728年检查,包括来自西伯利亚的化石牙齿和獠牙。斯隆是第一个认识到这些遗骸属于大象的人。[3] 斯隆转而寻求圣经对北极存在大象的解释,断言它们是在大洪水期间被掩埋的,并且西伯利亚在剧烈气候变化之前曾是热带地区。[4] 其他人对斯隆的结论略有不同解读,认为洪水将大象从热带冲到了北极。斯隆的论文基于旅行者的描述和在西伯利亚及不列颠收集的少量散骨。他讨论了这些遗骸是否来自大象的问题,但未得出结论。[5] 1738年,德国动物学家约翰·菲利普·布雷内认为猛犸象化石代表某种大象。他无法解释为什么热带动物会出现在西伯利亚这样寒冷的地方,并推测它们可能是被大洪水带到那里的。[6]
1796年,法国生物学家乔治·居维叶是第一个将真猛犸象遗骸识别为全新物种,而非被运送到北极的现代大象的人。他认为这个物种已经灭绝,不复存在,这一概念在当时并未被广泛接受。[2][7] 继居维叶的鉴定之后,德国博物学家约翰·弗里德里希·布卢门巴赫于1799年将真猛犸象命名为科学名称 Elephas primigenius,将其归入与亚洲象(Elephas maximus)相同的属。这个名称在拉丁语中意为“首生象”。居维叶几个月后创造了 Elephas mammonteus 一名,但前者随后被使用。[8] 1828年,英国博物学家约书亚·布鲁克斯为其收藏中待售的真猛犸象化石使用了 Mammuthus borealis 一名,从而创造了一个新属名。[9]
选模标本臼齿的20世纪30年代插图;左侧现已遗失。 “mammoth”一词的来源和含义尚不清楚。根据《牛津英语词典》,它源自古老的沃古尔语词汇 mēmoŋt,意为“地角”。[10] 它也可能是 mehemot(圣经词汇“behemoth”的阿拉伯语版本)的变体。另一种可能的起源是爱沙尼亚语,其中 maa 意为“大地”,mutt 意为“鼹鼠”。该词于17世纪早期在欧洲首次使用,指代在西伯利亚发现的 maimanto 獠牙。[1] 对古生物学有浓厚兴趣的美国总统托马斯·杰斐逊部分负责将“mammoth”一词从描述史前大象的名词转变为描述任何巨大尺寸事物的形容词。该词作为形容词的首次记录使用是在1802年描述一块送给杰斐逊的奶酪轮(“柴郡猛犸象奶酪”)时。[11]
到20世纪初,已灭绝大象的分类学变得复杂。1942年,美国古生物学家亨利·费尔菲尔德·奥斯本的遗作专著《长鼻目》出版,其中他使用了先前为猛犸象物种提出的各种分类名称,包括用 Mammonteus 替换 Mammuthus,因为他认为前者是无效发表。[12] 从20世纪70年代开始,猛犸象的分类学被多位研究者简化,所有物种都被保留在 Mammuthus 属内,许多先前被认为是物种间差异的特征被重新解释为种内变异。[13]
奥斯本从布卢门巴赫收藏在哥廷根大学的藏品中选择了两个臼齿(发现于西伯利亚和奥斯特罗德)作为真猛犸象的选模标本,因为在布卢门巴赫时代尚未实行正模标本指定,且布卢门巴赫描述过的其中一个标本属于不相干的古菱齿象(Palaeoloxodon antiquus)。苏联古生物学家维拉·格罗莫娃进一步提议将前者视为选模标本,后者视为副选模标本。这两个臼齿在20世纪80年代被认为已遗失,因此1948年在西伯利亚发现的更完整的“泰梅尔猛犸象”于1990年被提议作为新模标本标本。关于属名 Mammuthus 的有效性以及 E. primigenius 的模式种指定的历史问题的解决方案也被提出。[14][15] 副选模标本臼齿(标本编号 GZG.V.010.018)随后在哥廷根大学藏品中被找到,通过与奥斯本的铸模插图进行比较而确认。[8][16]
演化
乔治·居维叶1796年对真猛犸象(左下和右上)与印度象(左上和右下)下颌骨的比较 已知最早的长鼻目(包含现代大象的演化支)成员存在于大约5500万年前特提斯海周围。长鼻目已知最近的亲属是海牛目(儒艮和海牛)和蹄兔目(小型草食哺乳动物一个目)。象科存在于600万年前的非洲,包括现代大象和猛犸象。在众多现已灭绝的演化支中,乳齿象(Mammut)只是猛犸象的远亲,属于独立的乳齿象科,在猛犸象演化之前2500万年就已分化。[17] 亚洲象是猛犸象现存最近的亲属。[18] 以下分支图显示了基于遗传数据,真猛犸象在晚更新世及现代长鼻类中的位置:[19][20]
| 分类单元 | 中文名 |
|---|---|
| †Mammut americanum | 美洲乳齿象 |
| †Notiomastodon platensis | 南美嵌齿象 |
| 象科 (Elephantidae) | |
| †Mammuthus columbi | 哥伦比亚猛犸象 |
| †Mammuthus primigenius | 真猛犸象 |
| Elephas maximus | 亚洲象 |
| †Palaeoloxodon antiquus | 欧洲古菱齿象 |
| Loxodonta cyclotis | 非洲森林象 |
| Loxodonta africana | 非洲草原象 |
真猛犸象(上)与南方猛犸象(下)的下臼齿对比;注意较老物种(下)的釉质脊数量较少 在2005年至2006年的六周内,三个研究团队独立地从古DNA中组装出了真猛犸象的线粒体基因组图谱,从而确认了猛犸象与亚洲象(Elephas maximus)之间密切的演化关系。[21][22] 2015年的一项DNA审查确认亚洲象是真猛犸象现存的最近亲属。[23] 非洲象(Loxodonta africana)大约在600万年前从这一演化支中分支出去,接近黑猩猩与人类之间的类似分化时间。[24] 2010年的一项研究证实了这些关系,并表明猛犸象和亚洲象的谱系在580万至780万年前分化,而非洲象则在660万至880万年前从一个更早的共同祖先分化。[25]
2008年,真猛犸象大部分的染色体DNA被绘制成图。分析显示真猛犸象与非洲象的基因相似度为98.55%至99.40%。[26] 研究团队通过从一个来自永久冻土的2万年前的猛犸象和另一个死于6万年前的猛犸象的毛囊中提取DNA,绘制了真猛犸象的核基因组序列。[27] 2012年,蛋白质首次被可靠地识别,这些蛋白质是从一只4.3万年前的真猛犸象身上采集的。[28]
由于每种猛犸象的许多遗骸都来自多个地点,通过形态学研究重建该属的演化历史是可能的。猛犸象物种可以通过其臼齿上釉质脊(或板层)的数量来识别;原始物种脊数很少,随着新物种演化以取食更具磨损性的食物,脊数逐渐增加。为了适应这一点,齿冠变得更高,头骨也变得更高。与此同时,头骨从前到后变短,以尽量减轻头部重量。[29][30] 真猛犸象和哥伦比亚猛犸象(Mammuthus columbi)短而高的头骨是这一过程的顶峰。[31]
Mammuthus 属已知最早的成员是来自上新世的非洲物种南方猛犸象(Mammuthus subplanifrons)和来自更新世的 M. africanavus。前者被认为是后来形式的祖先。猛犸象大约在300万年前进入欧洲。最早的欧洲猛犸象被命名为 M. rumanus;它遍布欧洲和中国。只知其臼齿,显示有8-10个釉质脊。一个种群演化出12-14个脊,分化和取代了较早的类型,大约在200万至170万年前成为南方猛犸象(M. meridionalis)。反过来,这个物种又被具有18-20个脊的草原猛犸象(M. trogontherii)取代,草原猛犸象大约在100万年前于东亚演化。[29] 源自 M. trogontherii 的猛犸象在40万年前的西伯利亚演化出具有26个脊的臼齿,并成为真猛犸象。已识别的最早形式的真猛犸象可追溯到中更新世。[29] 真猛犸象大约在10万年前通过跨越白令海峡进入北美。[31]
亚种与杂交
M. trogontherii 与 M. primigenius 之间中间形态的铸模;M. p. fraasi,斯图加特国家自然博物馆(左),以及(先前归入 M. jeffersonii 的)标本,被认为是在美国自然历史博物馆的哥伦比亚猛犸象与真猛犸象之间的杂交(右)
已知存在个体和种群在每种猛犸象物种之间显示出过渡形态,原始和衍征物种共存,直到前者消失。不同的物种及其中间形态被称为“时间种”。许多介于 M. primigenius 和其他猛犸象之间的分类群已被提出,但其有效性不确定;根据作者不同,它们要么被认为是先进物种的原始形式,要么是原始物种的先进形式。[29] 区分和确定这些中间形态被称为第四纪古生物学中最持久和最复杂的问题之一。已提出的区域性和中间物种及亚种包括:M. intermedius、M. chosaricus、M. p. primigenius、M. p. jatzkovi、M. p. sibiricus、M. p. fraasi、M. p. leith-adamsi、M. p. hydruntinus、M. p. astensis、M. p. americanus、M. p. compressus 和 M. p. alaskensis。[12][32][33]
2011年的一项遗传学研究表明,两个被检查的哥伦比亚猛犸象标本被归入真猛犸象的一个子支系内。这表明两个种群进行了杂交并产生了可育的后代。一种先前被称为 M. jeffersonii 的北美类型可能是这两个物种之间的杂交后代。[34] 2015年的一项研究表明,在 M. columbi 和 M. primigenius 分布范围重叠的区域内的动物形成了一个具有不同形态的杂交集合种群。该研究还表明,欧亚大陆的 M. primigenius 在其分布范围重叠的区域与 M. trogontherii 有类似的关系。[35] 根据2025年对来自加拿大阿尔伯塔省的猛犸象牙齿的研究,该区域是真猛犸象与哥伦比亚猛犸象之间的同域和杂交区域。[36]
2021年,有史以来最古老(超过一百万年)的DNA被首次测序,来自两枚发现于西伯利亚东部的早更新世猛犸象牙齿。一枚来自阿迪查(100-130万年前)的牙齿属于后来真猛犸象祖先的谱系,而另一枚来自克列斯托夫卡(110-165万年前)的牙齿则属于一个新谱系。该研究发现,哥伦比亚猛犸象一半的祖先来自克列斯托夫卡谱系的亲属(这可能代表了首批殖民美洲的猛犸象),另一半来自真猛犸象谱系,杂交发生在超过42万年前的中更新世。后来的真猛犸象和哥伦比亚猛犸象也偶尔发生杂交,猛犸象物种可能在冰川扩张时定期杂交。这些发现是来自古DNA的杂交成种的第一个证据。该研究还发现,对寒冷环境的遗传适应(例如毛发生长和脂肪沉积)在草原猛犸象谱系中已经存在,并非真猛犸象所独有。[37][38]
描述
大型真猛犸象(红色)与人类及其他猛犸象的大小对比(左),以及高3.5米(11英尺)的大型欧洲公象和较小高2.7米(8英尺10英寸)的西伯利亚公象与人类对比的骨骼图(右)
由于许多保存有软组织的冰冻标本和同时代人类在艺术中的描绘,真猛犸象的外观很可能是所有史前动物中最著名的。该物种雄性的平均肩高估计为2.8–3.15米(9英尺2英寸–10英尺4英寸),体重为4.5–6公吨(9,900–13,200磅),雌性则像现存大象一样较小,肩高2.3–2.6米(7英尺7英寸–8英尺6英寸),体重2.8–4公吨(6,200–8,800磅)。[39] 这个大小与现存最大的大象物种非洲草原象(Loxodonta africana)相当,但远小于早期的 Mammuthus meridionalis 和 Mammuthus trogontherii 以及同时代的 Mammuthus columbi。[39][40] 真猛犸象在其分布范围内表现出体型差异,西欧的个体(成年雄性估计平均高2.99–3.31米(9英尺10英寸–10英尺10英寸),重5.2–6.9公吨(11,000–15,000磅))比西伯利亚的个体(该种群成年雄性估计平均高2.66–2.94米(8英尺9英寸–9英尺8英寸),重3.9–5.2公吨(8,600–11,500磅))大得多。有记录的最大真猛犸象之一是来自德国的西格斯多夫标本,其估计肩高为3.49米(11.5英尺),估计体重为8.2公吨(18,000磅)。[40] 新生幼崽体重约为90公斤(200磅)。[41]
平均大小的雄性和雌性真猛犸象体型对比 很少有冰冻标本保存了生殖器,因此性别通常通过检查骨骼来确定。性别的最佳指示是骨盆带的大小,因为作为产道的开口在雌性中总是比雄性宽。[42] 尽管弗兰格尔岛上的猛犸象比大陆上的要小,但它们的体型各异,并未小到可以被认为是“岛屿侏儒”。[43] 据称最后一批真猛犸象种群体型减小并增加了两性异形,但这一说法在2012年的一项研究中被否定。[44]
皇家不列颠哥伦比亚博物馆的模型 真猛犸象有几种适应寒冷的特征,最显着的是覆盖全身的毛层。其他对寒冷天气的适应包括远小于现代大象的耳朵;它们长约38厘米(15英寸),宽18–28厘米(7.1–11.0英寸),而6至12个月大的冰冻幼崽“迪马”的耳朵长度不足13厘米(5.1英寸)。小耳朵减少了热量散失和冻伤,尾巴同样短小,在“别廖佐夫卡猛犸象”身上只有36厘米(14英寸)长。尾巴含有21节椎骨,而现代大象的尾巴含有28-33节。它们的皮肤不比现代大象厚,介于1.25至2.5厘米(0.49至0.98英寸)之间。皮下有一层厚达10厘米(3.9英寸)的脂肪,有助于保暖。真猛犸象尾巴下方有宽阔的皮瓣覆盖肛门;这在现代大象中也能见到。[45]
洞穴壁画中描绘的其他特征包括一个大而高的单拱形头部和带有高肩隆的倾斜背部;这种形状是由于背部椎骨的棘突从前向后长度递减造成的。这些特征在幼体中不存在,幼体的背部像亚洲象一样是凸出的。洞穴壁画中显示的另一个特征在1924年发现的一个冰冻标本(一个绰号为“中科雷马猛犸象”的成年个体)身上得到确认,该标本保存了完整的象鼻末端。与现代大象象鼻的叶状结构不同,象鼻末端的上部“手指”有一个长而尖的叶状突起,长10厘米(3.9英寸),而下部“拇指”长5厘米(2.0英寸),更宽。“迪马”的象鼻长76厘米(30英寸),而成年“利亚霍夫猛犸象”的象鼻长2米(6英尺7英寸)。[45] 一个绰号为“尤卡”的幼年标本保存完好的象鼻在2015年被描述,其末端上方三分之一处有一个肉质的膨大结构。这部分不是像象鼻其余部分那样呈椭圆形,而是横截面为椭圆形,直径是其余部分的两倍。这个特征在另外两个不同性别和年龄的标本中也存在。[46]
毛被
维也纳自然历史博物馆的毛发(左),以及粗毛的扫描电子显微镜放大图像
毛被由外层长而粗糙的“粗毛”组成,在身体上部长度为30厘米(12英寸),胁部和腹侧长度可达90厘米(35英寸),直径0.5毫米(0.020英寸),以及一层更密集的内层较短、微卷的绒毛,长度可达8厘米(3.1英寸),直径0.05毫米(0.0020英寸)。上腿的毛长达38厘米(15英寸),脚上的毛长15厘米(5.9英寸),直达脚趾。头部的毛相对较短,但象鼻下方和两侧的毛较长。尾巴有长达60厘米(24英寸)的粗毛延伸,这些粗毛比粗毛更粗。真猛犸象可能季节性换毛,最厚重的毛在春季脱落。[47]
由于猛犸象尸体更有可能被保存下来,冰冻标本中可能只保存了冬季毛被。现代大象的毛发少得多,尽管幼年个体的毛发比成年个体更密集。[47] 这被认为是用于体温调节,帮助它们在炎热环境中散热。[48] 对真猛犸象和现存大象粗毛的比较显示,它们在整体形态上没有太大差异。[[49]](https://en.wikipedia
“便携艺术品”比洞穴艺术更能准确断代,因为它与工具和其他冰河时期文物发现于同一地层。已知最大数量的猛犸象便携艺术品收藏,包含刻在47块石板上的62幅猛犸象图案,于1960年代在德国 Gönnersdorf 一处发掘出的露天营地被发现。猛犸象图案的数量与该地点最常见的狩猎物种之间似乎并无关联,因为该遗址最常发现的动物遗骸是驯鹿骨骼。在法国发现了两件被雕刻成猛犸象形状的投矛器。[100] 一些便携式猛犸象艺术品可能并非在其发现地制作,而是通过古代贸易流通而来。[101]
开发利用
 基于在梅日里奇发现的骨骼重建的骨屋,在日本展出
在冰河时期,尼安德特人和现代人类都曾使用猛犸象的骨骼作为建造居所的建筑材料。[102] 已知有超过70处这样的居所,主要发现于东欧平原。这些棚屋的底座呈圆形,面积从8到24平方米不等。居所的排列方式各异,间距从1米到20米不等,具体取决于地点。大型骨骼被用作棚屋的地基,象牙用于入口,屋顶可能是用兽皮覆盖,再用骨骼或象牙固定。一些棚屋的地面低于地面40厘米。用于建造材料的骨骼可能部分来自人类猎杀的猛犸象,但骨骼的状态以及用于建造单个居所的骨骼年龄相差数千年的事实表明,它们是从已死亡很久的动物遗骸中收集来的。猛犸象的骨骼被制成各种工具、家具和乐器。大型骨骼,如肩胛骨,在埋葬时被用来覆盖死者尸体。[103]
猛犸象牙被用来制作艺术品。几尊维纳斯雕像,包括布拉桑普伊的维纳斯和莱斯皮格的维纳斯,都是由这种材料制成的。已知有用象牙制成的武器,如匕首、矛和回旋镖。2019年的一项研究发现,在更新世晚期,猛犸象牙最适合制作大型猎物投掷尖头器。为了加工象牙,需要将巨大的象牙砍、凿并分割成更小、更易于处理的碎片。一些象牙制品表明象牙曾被拉直过,但实现方法尚不清楚。[104][74]


由猛犸象牙制成的文物:布拉桑普伊的维纳斯、摩拉瓦尼的维纳斯和狮人雕像
猛犸象是现代人类和尼安德特人重要的食物来源。[105] 几具猛犸象标本显示出被人类屠宰的证据,表现为骨骼上的断裂、切割痕迹以及相关的石器。史前人类在多大程度上依赖猛犸象肉尚不清楚,因为当时还有许多其他大型食草动物可用。许多猛犸象尸体可能被人类拾荒(即食腐)而非猎杀。一些洞穴壁画描绘了猛犸象陷入被解释为陷阱坑的结构中。很少有标本能提供直接、明确的证据表明曾遭人类猎杀。一个西伯利亚标本的肩胛骨上嵌有矛头,表明曾有一根矛以极大的力量投向它。[106]
在波兰南部一个包含超过100具猛犸象骨骼的地点,发现石制矛尖嵌入骨骼中,并且该地点许多石制矛尖因撞击猛犸象骨骼而损坏,表明当时猛犸象是当地人的主要猎物。[107] 意大利一件属于莫斯特文化时代的标本显示了尼安德特人用矛狩猎的证据。[108] 绰号为“Yuka”的幼年标本是第一具显示与人类互动证据的冷冻猛犸象。它的遗骸显示出被大型捕食者杀死后不久被人类拾荒的迹象。它的一些骨骼被移走并在附近被发现。[109] 在西伯利亚亚纳河附近的一个地点,发现了几具带有人类狩猎证据的标本,但这些发现被解释为表明这些动物并非被高强度狩猎,而可能主要是在需要象牙时才被猎杀。[110] 来自威斯康星州的两只猛犸象,“Schaefer猛犸象”和“Hebior猛犸象”,显示出被古印第安人屠宰的证据。[111][112]
灭绝
大多数猛犸象种群在更新世晚期和全新世中期消失,[113] 这与大多数北美更新世巨型动物群(包括哥伦比亚猛犸象)的灭绝,以及与猛犸象共存(如披毛犀、洞狮、驯鹿、高鼻羚羊、北极狐和草原旅鼠)的欧亚草原相关动物群的灭绝或局部灭绝同时发生。这次灭绝是更新世晚期灭绝事件的一部分,始于40,000年前,在14,000至11,500年前达到顶峰。科学家们对于导致猛犸象灭绝的主要因素究竟是狩猎、导致其栖息地缩小的气候变化,还是两者的结合,存在分歧。[114][115] 来自象牙衍生的δ18O值证据表明,气候变化并非欧亚猛犸象灭绝的直接原因,因为在猛犸象消失的区域以及它们在全新世持续存在更久的区域,δ18O并无显著变化。[116]
 旧石器时代 从猛犸象牙制成的投掷尖头器,佩卡尔纳洞穴
无论原因为何,大型哺乳动物通常比小型哺乳动物更脆弱,因为它们种群数量小、繁殖率低。[117] 末次间冰期(130-116 kyr BP)期间的气候模式表明,猛犸象及其相关的草原动物群对草原-苔原栖息地的收缩很敏感,因为它们适应寒冷、干燥和开阔的环境。遗传结果和气候模型都表明,在间冰期,欧亚大陆适合猛犸象的栖息地收缩,这将导致种群瓶颈效应,将其范围限制在少数北部地区。然而,当气候向更寒冷的环境转变时,猛犸象种群在随后的冰期得以恢复。[118]
更新世晚期的末次冰期被认为是猛犸象地理分布最广的时期,它们占据了欧洲大部分地区、北亚和北美北部,尽管存在冰盖、高山山脉、沙漠、终年水面和其他草原等障碍,阻止了它们进一步扩散。[119] 在末次冰期末期,大约从15,000年前开始,猛犸象居住的猛犸草原在西伯利亚大部分地区逐渐被潮湿的苔原、北方森林和温带森林所取代,这些是猛犸象不喜欢的栖息地。[120]
不同的猛犸象种群并非在其分布范围内同时灭亡,而是随着时间的推移逐渐灭绝。[121] 不同猛犸象种群的动态变化各不相同,因为它们随时间经历了截然不同的气候和人类影响强度,这表明灭绝原因可能因种群而异。[122] 大多数种群在14,000至10,000年前消失。[123] 在英国,猛犸象存在于14,500至14,000 BP之间。[124] 大陆种群最年轻的化石来自西伯利亚的基特克半岛,年代为9,650年前。[117][123]

 在弗兰格尔岛展示的猛犸象和麝牛遗骸(左)以及在泰梅尔半岛发掘的骨骼(右),这些地方的猛犸象存活到约4,000年前
一小群猛犸象在阿拉斯加的圣保罗岛存活到全新世晚期,[125][126][127] 根据骨骼的直接测年和环境替代指标,它们在岛上的灭绝时间被严格限定在大约5,600年前。该种群的灭绝被认为是海平面上升和岛屿日益干旱导致淡水可用性减少,以及猛犸象活动破坏了岛上为数不多的淡水来源的结果。[128] 已知来自化石的最后种群一直留在北冰洋的弗兰格尔岛上,直到4,000年前,那时人类文明早已开始,甚至在古埃及的大金字塔和狮身人面像建成之后几个世纪。[129][130][131][132] 然而,一些研究声称环境DNA支持存在小型大陆种群,它们大约与其岛屿同类同时灭绝;2021年的两项研究发现,根据环境DNA,猛犸象在育空地区存活到大约5,700年前,大致与圣保罗岛种群同时代,而在西伯利亚的泰梅尔半岛存活到3,900至4,100年前,大致与弗兰格尔岛种群同时代。泰梅尔半岛拥有更干燥的栖息地,可能作为猛犸草原的避难所,支持了猛犸象和其他广泛分布的冰河时代哺乳动物如野马(Equus 属)的生存。[113][133] 然而,寒冷环境中的古代环境DNA可能会从较老的沉积物中被搬运到明显晚于灭绝时间的较年轻沉积物中,这使这些日期的有效性受到质疑。[134]
对两只猛犸象(一只来自西伯利亚,距今44,800年;一只来自弗兰格尔岛,距今4,300年)遗骸的DNA测序表明,发生了两次重大的种群数量崩溃:一次大约在280,000年前,种群从那以后恢复了;第二次大约在12,000年前,接近冰河时代末期,种群未能恢复。[135] 弗兰格尔岛的猛犸象因冰河时代后海平面上升而被隔离了5,000年,其约300至1,000个个体的[136] 小种群近亲繁殖导致杂合性丢失20%[135] 至30%,[132] 以及线粒体DNA多样性丢失65%。[132] 该种群此后似乎保持稳定,没有再遭受显著的遗传多样性损失。[132][137] 因此,遗传证据暗示这个最终种群的灭绝是突然的,而非逐渐衰退的高潮。[132]
 显示欧亚大陆更新世晚期和全新世猛犸象气候适宜性的地图:红色表示适宜性增加,绿色表示适宜性降低。黑点是猛犸象记录,黑线是人类活动的北界
在其灭绝之前,弗兰格尔岛的猛犸象由于其小型种群已积累了大量的遗传缺陷;特别是,许多用于嗅觉受体和尿蛋白的基因变得无功能,可能是因为它们在岛屿环境中失去了选择价值。[138] 目前尚不清楚这些遗传变化是否导致了它们的灭绝。[139] 有人提出这些变化与基因组崩溃的概念一致,[138] 然而,后来对弗兰格尔岛上最后一些猛犸象基因组的分析对此提出了质疑,该分析表明,高度有害的突变已被显著清除,水平低于大陆种群,尽管中等有害突变的水平有所升高。[140] 一个看似稳定种群的突然消失,可能更符合灾难性事件,可能与气候(如积雪结冰)、疾病或人类狩猎远征有关。[140][141]
这些猛犸象的消失时间相对接近人类首次出现在该岛上的证据,[142] 尽管其他作者认为,在人类到达弗兰格尔岛(大约在3,600年前)之前的几个世纪,猛犸象几乎肯定已经灭绝了。[120][140] 白令西亚东部(今阿拉斯加和育空地区)的猛犸象同样大约在13,300年前灭绝,紧接着该地区人类首次出现之后(大约1,000年),这与其他所有晚更新世长鼻目动物(猛犸象、嵌齿象科和乳齿象)以及美洲其他大部分巨型动物群的命运相似。[143] 相比之下,圣保罗岛的猛犸象种群显然在人类到来之前很久就灭绝了。[128]
气候变化使适合猛犸象的栖息地从42,000年前的7,700,000平方公里缩小到6,000年前的800,000平方公里,减少了大约90%。[144][145] 猛犸象在倒数第二次冰期末期和末次间冰期开始时(约125,000年前)幸存了更大的栖息地丧失。[146][147] 对加拿大西南部一条11,300–11,000年前的足迹的研究表明,M. primigenius 在与人类共存时正在衰退,因为鉴定出的幼年足迹远少于正常象群中的预期数量。[60] 有人认为,数千年来人类狩猎对猛犸象种群在其整个分布范围内都施加了巨大压力,使其种群丰度远低于没有人类狩猎时的情况,甚至在其分布范围缩小之前就已如此,并且可能加速了猛犸象在气候变化下的分布范围崩溃。[122]
复活尝试
更多信息:复活猛犸象

 在斯图加特国家自然历史博物馆展出的成年象和幼象“迪马”模型
保存完好的猛犸象软组织遗骸和DNA的存在,引发了可以通过科学方法复活该物种的想法。已有几种方法被提出。克隆涉及移除雌性大象卵细胞中含有DNA的细胞核,并用猛犸象组织中的细胞核替换。然后刺激该细胞分裂并植回雌性大象体内。由此产生的小象将拥有猛犸象的基因,尽管其胎儿环境会有所不同。由于保存条件的原因,大多数完整的猛犸象只有很少可用的DNA。这不足以指导胚胎的产生。[148][149]
第二种方法涉及用来自冷冻猛犸象尸体的精子细胞人工授精大象卵细胞。由此产生的后代将是大象-猛犸象杂交种,并且必须重复该过程,以便使用更多的杂交种进行繁殖。经过几代这种杂交种的杂交繁殖后,将产生几乎纯种的猛犸象。由于现代哺乳动物的精子细胞在深度冷冻后最多只能存活15年,这使得该方法不可行。[149]

几个项目正在致力于逐步用猛犸象基因替换大象细胞中的基因。[150][151] 到2015年,利用新的CRISPR DNA编辑技术,由乔治·丘奇领导的一个团队已经将一些猛犸象基因编辑到了亚洲象的基因组中;最初聚焦于耐冷性,[152] 目标基因涉及外耳大小、皮下脂肪、血红蛋白和毛发特征。[153][154] 如果任何方法最终成功,有人建议将这些杂交种引入西伯利亚一个名为更新世公园的野生动物保护区。[155]
一些研究人员质疑这种复活尝试的伦理性。除了技术问题外,适合大象-猛犸象杂交种的栖息地已经不多了。由于该物种是群居的,创造几个个体并不理想。所需的时间和资源将是巨大的,而科学益处尚不清楚,这表明这些资源应用于保护濒危的现存大象物种。[149][156][157] 在杂交尝试中使用大象作为代孕母亲的伦理问题也受到质疑,因为大多数胚胎无法存活,而且了解杂交大象-猛犸象幼崽的确切需求是不可能的。[158] 另一个担忧是,如果复活努力成功,可能会引入未知的病原体。[159] 2021年,一家总部位于奥斯汀的公司筹集资金,计划将该物种重新引入北极苔原。[160]
化石标本
更多信息:猛犸象标本列表
 来自托木斯克的“家庭群”组架
猛犸象化石在各种类型的沉积物中被发现,包括以前的河流和湖泊,以及在北海的“多格兰”,该处在冰河时期有时是干燥的。这些化石通常是不完整的,不含软组织。现代大象遗骸的堆积被称为“大象墓地”,因为这些地点曾被错误地认为是年老大象走向死亡的地方。也发现了类似的猛犸象骨骼堆积;这些被认为是数千年来个体在河流附近或河流中死亡,其骨骼最终被水流聚集在一起的结果。一些堆积被认为是同时死在一起的象群遗骸,可能是由于洪水造成的。天然陷阱,如壶穴、落水洞和泥浆,在不同时间捕获了猛犸象。[161]
 渔民在北海(“多格兰”)发现的头骨,现藏于爱尔兰凯尔特与史前博物馆
除了冷冻遗骸外,唯一已知的软组织来自波兰斯塔鲁尼亚一个石油渗漏中保存的标本。猛犸象的冷冻遗骸在西伯利亚北部和阿拉斯加被发现,后者发现的数量少得多。这些遗骸主要发现在北极圈以上的永久冻土中。在30,000到15,000年前,软组织似乎不太可能被保存下来,可能是因为那个时期气候较温和。大多数标本在发现前已部分降解,原因是暴露在外或被食腐动物啃食。这种“自然木乃伊化”要求动物被迅速掩埋在液体或半固体(如淤泥、泥浆和冰水)中,然后冻结。[162]
许多标本胃中存在未消化的食物,嘴里仍有豆荚,这表明它们不太可能死于饥饿或暴露。这些摄入植物的成熟度将死亡时间定在秋季而非春季,因为春季应该会看到花朵。[163] 这些动物可能掉入冰层掉进小池塘或坑洞,从而将它们掩埋。许多已知肯定是在河流中丧生,可能是被洪水冲走。在一个地点,位于西伯利亚萨哈共和国的比奥廖廖赫河畔,在一个地方发现了来自至少140只猛犸象的超过8,000块骨骼,显然是被水流冲至此处的。[164]
冷冻标本

 1800年代绘制的“亚当斯猛犸象”(左)和在维也纳展出;头部和脚部可见皮肤。
在1692年至1806年间,欧洲偶尔有关于发现带有软组织的冷冻猛犸象遗骸的报告,但当时没有任何标本被收集。[165] 尽管欧洲人早在1728年就开始发掘冷冻的猛犸象尸体,但第一个有完整文献记录的标本是1799年由西伯利亚猎人奥西普·舒马乔夫在勒纳河三角洲附近发现的。[166] 1806年在雅库茨克时,米夏埃尔·弗里德里希·亚当斯听说了这只冷冻猛犸象。亚当斯回收了完整的骨架,除了舒马乔夫已经卖掉的象牙,以及一条前腿、大部分皮肤和近18公斤的毛。在回程途中,他买了一对象牙,他认为就是舒马乔夫卖掉的那对。亚当斯将所有这些带回了俄罗斯科学院动物研究所动物博物馆,制作骨架模型的任务交给了威廉·戈特利布·蒂莱修斯·冯·蒂勒瑙。[5][167] 这是最早尝试重建灭绝动物骨架的工作之一。大部分重建是准确的,但蒂莱修斯将每根象牙放错了牙槽,导致它们向外弯曲而不是向内。这个错误直到1899年才被纠正,而猛犸象象牙的正确放置位置直到20世纪仍是一个争论话题。[168][169]

 1901年发掘时的“别廖佐夫卡猛犸象”(左),以及部分覆盖其皮肤制成的模型,圣彼得堡动物学博物馆
1901年发掘的“别廖佐夫卡猛犸象”是早期发现中文献记录最完整的。它是在西伯利亚别廖佐夫卡河畔被发现的(一只狗闻到了它的气味),俄罗斯当局资助了发掘。整个探险耗时10个月,标本在运往圣彼得堡之前不得不被切成碎片。头部和象鼻的大部分皮肤已被捕食者啃食,大部分内脏已经腐烂。它被鉴定为一头35至40岁的雄性,死于35,000年前。这头动物牙齿间和舌头上还残留着草,表明它是突然死亡的。它的一个肩胛骨断裂了,可能是在掉进裂缝时发生的。它可能死于窒息,如其勃起的阴茎所示。圣彼得堡动物学博物馆中猛犸象复制品的三分之一覆盖着“别廖佐夫卡猛犸象”的皮肤和毛发。[162][163]


 法国国家自然历史博物馆的带皮毛的腿(左),填充的腿(中),和美国自然历史博物馆的幼象“Effie”(右)
到1929年,已有34具带有冷冻软组织(皮肤、肉或器官)的猛犸象遗骸被记录。其中只有四具相对完整。自那以后,又发现了大致相同数量的标本。在大多数情况下,肉在冻结和随后的干燥之前就显示出腐烂迹象。[170] 自1860年以来,俄罗斯当局为发现冷冻的猛犸象尸体提供高达1000卢布的奖励。由于迷信,这类发现经常被保密。几具尸体因未被报告而丢失,还有一具被喂了狗。[161] 尽管有奖励,当地雅库特人也因过去受到的不公正对待而不愿向当局报告猛犸象的发现。[165] 近年来,科学考察队致力于寻找尸体,而不是仅仅依靠偶然发现。阿拉斯加最著名的冷冻标本是绰号为“Effie”的幼象,于1948年被发现。它包括头部、象鼻和一条前腿,约有25,000年历史。[161]

 “迪马”,一只冷冻幼象,发掘时(左),以及在动物学博物馆展出;注意腿上的毛发
1977年,发现了一具保存完好的7至8个月大的猛犸象幼崽尸体,名为“迪马”。这具尸体是在西伯利亚东北部科雷马河的一条支流附近发现的。这个标本死时重约100公斤,高104厘米,长115厘米。放射性碳测年确定“迪马”死于约40,000年前。它的内脏与现代大象相似,但它的耳朵只有同龄非洲象耳朵大小的十分之一。1988年,在亚马尔半岛发现了一个不太完整的幼年个体,绰号“Mascha”。它有3-4个月大,右脚上的裂伤可能是死因。这是目前发现的最西部的冷冻猛犸象。[171]
1997年,在俄罗斯西伯利亚泰梅尔半岛的冻原上发现了一根猛犸象牙的碎片。1999年,这具有20,380年历史的尸体和25吨周围沉积物由一架米-26重型直升机运往哈坦加的一个冰洞。该标本被昵称为“Jarkov猛犸象”。2000年10月,在这个洞穴中开始了仔细的解冻操作,使用吹风机来保持毛发和其他软组织完整。[172][173]

 幼象“柳
还没有人评论,去客户端里说两句吧。
评论在新手盒子客户端中发表,这里同步展示。